
ДХА = DCA = дихлорацетат натрия — его возможности в лечении раковых опухолей
Эта статья глава из книги Г.А. Гарбузова: ЭПИГЕНЕТИКА РАКА
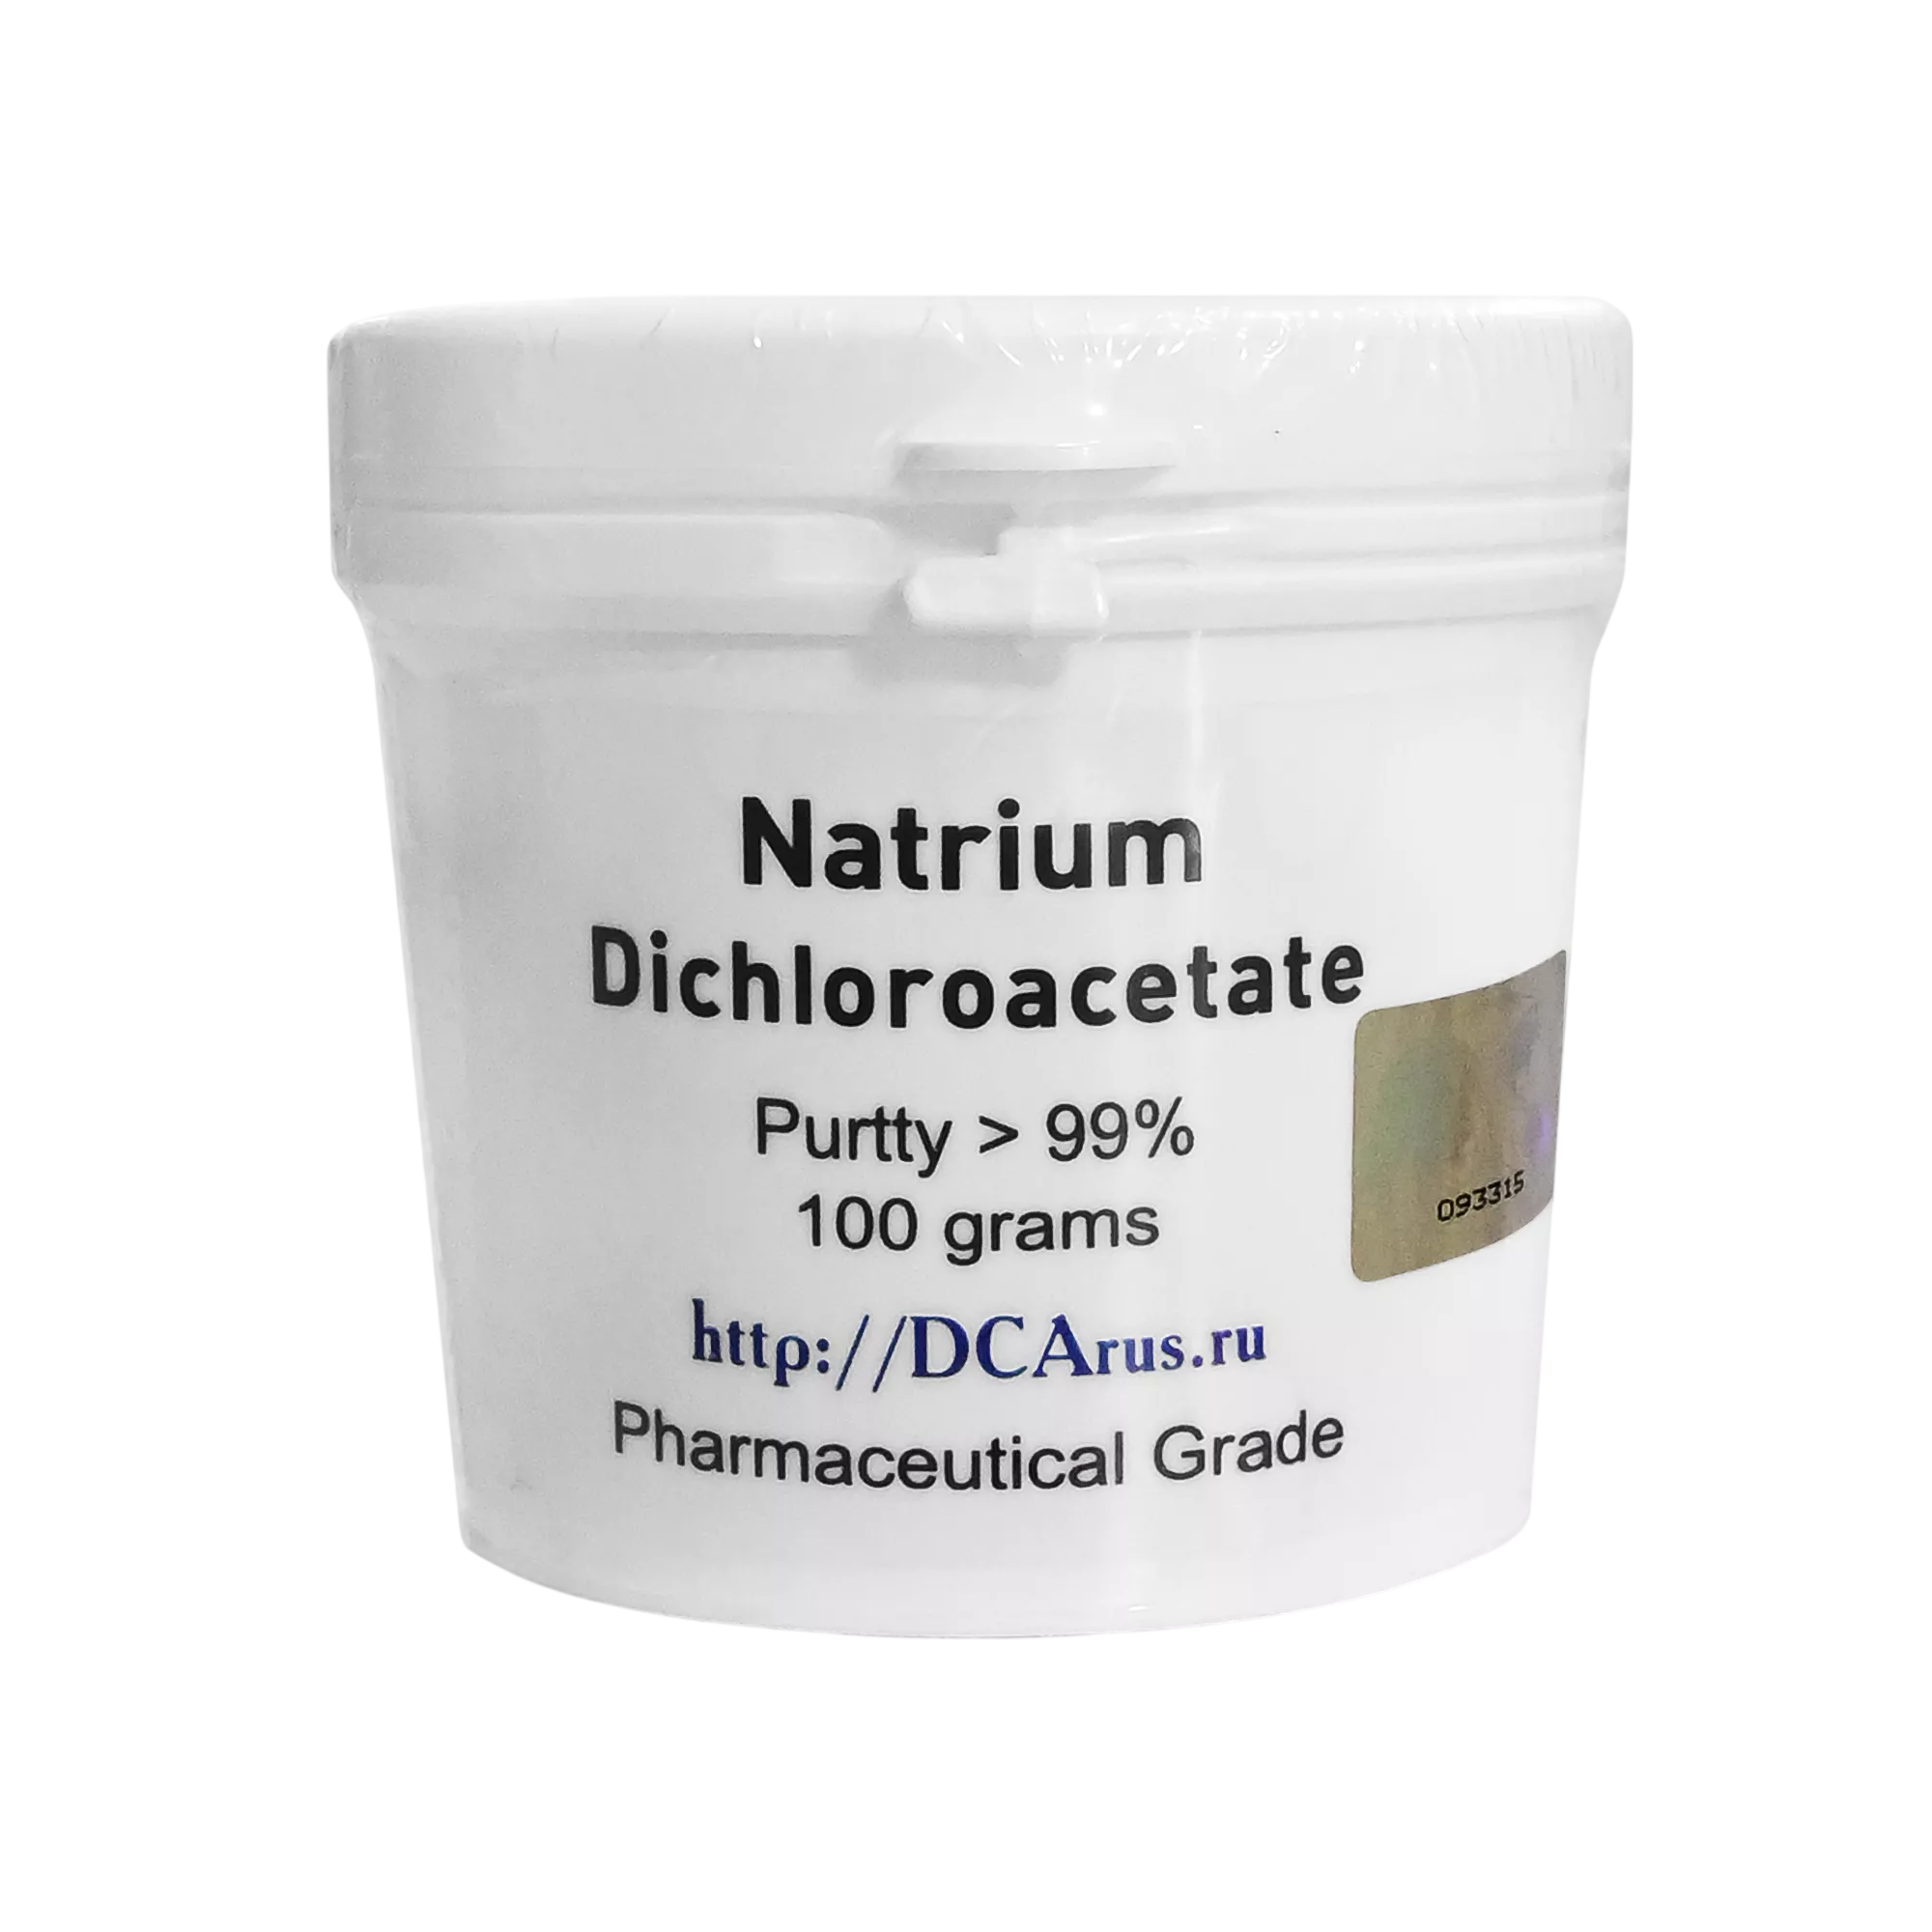 Важнейший препарат, который в нашей комбинации предназначен для выведения раковых клеток на путь апоптоза (предварительно денудированных*). Действует не в ТМЕ, а в CanPC. Прямыми ударами вывести туморную агломерацию на путь апоптоза без преодоления «парадоксальных реакций» невозможно. Поэтому предварительно осуществляется ряд манипуляций, которые заводят опухоль в денудированную дормантность состояние (спячку = де-резиленция + сенситивизация), а только после этого становится возможным делать в них «шокерные удары» и уводить на путь апоптоза.
Эффективность ДХА зависит от типа опухоли и её индивидуальных характеристик (специфическая сторона). В одних случаях он вызывает гибель клеток (цитотоксический эффект), в других — лишь останавливает их рост (цитостатический эффект). Такой разный ответ у различных типов опухолей на ДХА автор объясняет специфической реакцией. Но при этом у каждого типа раковых опухолей имеется и неспецифическая их сторона - их общий знаменатель. Введение различных опухолей в денудацию повышает их чувствительность, снижая их агрессивность и парадоксальность ответа, повышает эффективность приёма ДХА и расширяет его спектр возможностей у самых различных типов опухолей.
При этом, ДХА может вызывать побочные эффекты, включая нейропатию (поражение периферических нервов), что требует обязательного врачебного контроля. Для снижения этой побочки рекомендуется одновременно принимать альфа-Липоевую кислоту и витамин В1. Показано, что лечение с применением ДХА сопровождается развитием тиаминового истощения. В исследованиях на мышах показано, что при совместном введении тиамина нейротоксичность препарата нивелируется.
Сочетание его с рядом антиоксидантов-союзников также снижает эту побочку. В качестве союзников (усилителей эффекта) для DCA применяются Дигидрокверцетин и Эпигаллокатехин чая.
Механизм действия ДХА:
- Снижение концентрации лактата за счёт ингибирования фосфорилирования пируватдегидрогеназы.
- Стимулирование функции митохондрий и сдвиг метаболизма раковых клеток из анаэробного гликолиза в аэробный режим с участием митохондрий.
Казалось бы: дихлорацетат ДХА (DCA) — вызывает оксидативный стресс в раковых клетках и бьёт по ним как шокер, тогда как Дигидрокверцитин + Эпигаллокатехин (EGCG) + Индол-3-карбинол — антиоксиданты и гасят оксидативный стресс, то есть действуют как антагонисты. Но нет, они это делают больше в ТМЕ. В чём суть, что они синергисты и усилители ДХА? Дело в том, что в самих раковых клетках эти союзники проявляют свой парадоксальный эффект – оксидативный. Таким образом они не «гасят» стресс в целом, а помогают управлять им так, чтобы сфокусировать главный удар именно по раковым клеткам, а не защитить их. То есть синергия строится на тонких молекулярных механизмах, когда ТМЕ и CanPC к ним относятся по-разному: в ТМЕ они антиоксиданты, а в CanPC – оксиданты (эффект парадокса).
Ключевая идея: ДХА сам по себе нарушает метаболизм раковых клеток, заставляя их переключаться на окислительное фосфорилирование, что неизбежно ведёт к накоплению активных форм кислорода (АФК). Антиоксиданты в этой схеме не «отменяют» этот эффект полностью, а скорее оптимизируют ответ клетки. Они могут предотвращать тотальное повреждение, которое убило бы и здоровые клетки (тем самым снижая токсичность для организма), но при этом в раковых клетках, где уже есть уязвимости, этот управляемый стресс становится триггером для более выраженной гибели. То есть антиоксиданты работают как «тонкая настройка», а не как полная защита.
Метод полуголода позволяет снижать дозы ДХА до безопасных (15 мг/кг), а на фоне союзников даже повышать безопасно дозы для повышения эффективности.
Как это работает?
- Дихлорацетат натрия влияет на метаболизм раковых клеток. Он блокирует фермент пируватдегидрогеназу киназу (PDK), из-за чего клетки не могут эффективно использовать гликолиз (так называемый эффект Варбурга). Стратегия другая: не блокирует гликолиз напрямую, а стимулирует митохондриальное окислительное фосфорилирование (OXPHOS), «переключая» клетку с гликолиза на более эффективный путь.
- DCA вызывает в онкоклетке стресс, который действительно может запускать в клетке ответные реакции.
- Выработку некоторых стресс-индуцированных молекул лигандов (например, лигандов, которые распознают иммунные естественные киллеры — NK-клетки). Лиганды на мембране клеток способствуют видимости раковых клеток иммунитету. Таким образом, в условиях организма не обязательно достигать критических апоптозных доз DCA. Для апоптоза нужны высокие цитотоксические дозы, но для наших целей достаточно малых цитостатических доз, так как более важно запустить противораковый иммунный ответ через лиганды. Но для этого нужны дополнительные условия денудации = де-резиленции и сенсибилизации. Эти условия и предусматривает автор в своей комбинации метода полуавтономии с другими методами, способствующими иммунному самоуничтожению опухоли.
- DCA действительно индуцирует стресс-лиганды на опухолевых клетках. Это показано в нескольких независимых исследованиях. DCA вызывает экспрессию NKG2D-лигандов — MICA/B, ULBP1, а также ICAM-1 и рецептора смерти DR5 — на поверхности раковых клеток. Эти лиганды распознаются активирующим рецептором NKG2D на NK-клетках и цитотоксических T-лимфоцитах, что приводит к распознаванию и уничтожению опухолевых клеток. hal.science +1
- Цитостатические дозы вместо цитотоксических — обоснованная стратегия. Исследования действительно показывают, что DCA в определённых концентрациях действует именно как цитостатик, подавляя пролиферацию без индукции апоптоза. Показано, что DCA цитостатичен in vitro и in vivo, и может обеспечивать длительную стабилизацию заболевания без необходимости высоких цитотоксических доз. Описание случая длительной стабилизации рака толстой кишки 4 стадии на пероральном DCA также подтверждает, что цитостатический эффект может быть клинически значимым.
- DCA восстанавливает иммунную функцию через снижение лактата. Опухолевый лактат создаёт иммуносупрессивное микроокружение — подавляет NK-клетки, CD8+ T-клетки, снижает выработку IFN-γ, ингибирует путь mTOR, вызывает апоптоз NK-клеток. DCA, ингибируя пируватдегидрогеназкиназу (PDK) и переключая метаболизм с гликолиза на окислительное фосфорилирование, снижает продукцию лактата, тем самым восстанавливая противоопухолевую иммунореактивность. На мышах показано, что DCA повышает количество IFN-γ-продуцирующих CD8+ T- и NK-клеток в селезёнке. frontiersin.org +1
- Ключевое ограничение: статус p53. Это, пожалуй, самый критический момент для обсуждаемой концепции. Индукция стресс-лигандов под действием DCA зависит от статуса p53. Исследование в Scientific Reports (2022) чётко показало: DCA индуцирует экспрессию MICA/B, ULBP1 и ICAM-1 и сенсибилизирует опухолевые клетки к NK-клеткам и CTL только при диком типе p53 (wtp53). При мутантном или нулевом p53 наблюдается противоположный эффект — снижение экспрессии лигандов и, соответственно, отсутствие сенсибилизации к иммунному уничтожению. hal.science +1
- Аналогичные данные получены на клетках рака молочной железы: клетки MCF7 (wtp53) отвечали на DCA повышением MICA/B и ULBP1 и снижением насоса ABCG2, тогда как клетки с мутантным p53 (MDA-MB-231, T47D) давали противоположный ответ.
- Это означает, что для значительной доли опухолей с мутациями p53 (а это очень распространено — до 50% всех солидных опухолей) стратегия «малых доз DCA для индукции лигандов» может не работать или даже работать против.
Дополнительные механизмы сенсибилизации. DCA сенсибилизирует опухолевые клетки к цитотоксическим лимфоцитам через несколько параллельных механизмов:
- Стресс-лиганды (MICA/B, ULBP1) — распознавание через NKG2D
- ICAM-1 — обеспечивает контакт между клетками через LFA-1, что критически важно для распознавания CTL
- DR5 — рецептор смерти, связывающий TRAIL на эффекторных клетках
- Снижение лактата — восстановление функции NK и T-клеток в микроокружении
Это многофакторный механизм, что в принципе подтверждает идею комбинаторного подхода.
- Комбинаторные стратегии. Исследования подтверждают, что DCA хорошо работает в комбинациях:
- DCA + бикарбонат натрия — хроническое совместное применение увеличивало выживаемость и уменьшало объём опухоли у мышей
- DCA через гиперстресс раковых клеток может дать нужный «толчок» для апоптоза. Но преимущественно это возможно у клеток прошедших через подготовительные «адаптационные тренировки» и которые теряя агрессивность «замирают», но не уходят совсем (цитостатический эффект). Они ведут себя на подобие сенесцентных клеток — не делятся, но мешают другим. Важно их подтолкнуть в «пропасть». Поэтому здесь DCA может сыграть такую роль (цитотоксический эффект), но только на конечных циклах «полуавтономии». Это означает, что рекомендовать DCA после 2-х месяцев, то есть с 3-го месяца курса полуавтономии, когда онкоклетки будут подготовлены к такому шоку. А в начале цикла лучше принимать Янтарную кислоту, которая действует, наоборот, в противоположную сторону с DCA. Она усиливает работу митохондрий, а как антиоксидант помогает снижать окислительный стресс, что важно на начальных этапах полуавтономии.
- Подавление пути mTOR. И DCA, и кверцетин по отдельности блокируют этот сигнальный путь, который часто гиперактивен в раковых клетках и стимулирует их пролиферацию. В комбинации эффект усиливался.
- Усиление выработки активных форм кислорода (АФК). Совместное действие приводило к более значительному росту уровня АФК, что в итоге провоцировало повреждения ДНК и запускало апоптоз (программируемую гибель клеток).
- Влияние на микроокружение опухоли. Комбинация помогала предотвращать закисление внеклеточной среды (снижала продукцию лактата), что тоже создавало менее благоприятные условия для роста опухоли.
- Усиление иммунного ответа. В модели с иммунокомпетентными мышами сочетание DCA и кверцетина не только тормозило рост опухоли, но и способствовало её более полному очищению. Это связывали с уменьшением количества Treg-лимфоцитов, которые часто подавляют противоопухолевый иммунитет.
- Ослабление Treg-лимфоцитов. Очевидно, загадка кроется в том, что ДХА работает на стресс в раковых клетках, а мягкие дозы данных антиоксидантов действуют на Treg-лимфоциты, которые называют «миротворцами» и ослабляют иммунный противоопухолевый ответ, не допускают избыточного воспаления и аутоиммунных реакций. Как видим «палка о двух концах»: гасить в опухолях избыточное провоспаление — хорошо, но снижать иммунный противоопухолевый ответ — плохо. Здесь нужна оптимизация действия разнонаправленных процессов: снижать провоспаление в ТМЕ (с помощью Treg-лимфоцитов и антиоксидантов), но усиливать иммунную атаку на сому (ДХА). Очевидно, антиоксиданты (особенно эпигаллокатехин) позволяют даже безвредно усилить требуемую дозу ДХА, но ослабить его побочку. Причем кверцетин и эпигаллокатехин в ТМЕ действуют как антиоксиданты, а в раковой соме – как оксиданты, то есть прямое усиление ДХА – двойное положительное действие.
Об DCA «де-резистентности» и «сенсибилизации»
Терминология «денудации/де-резистентности» в данном контексте относится к снятию защитных механизмов опухоли — снижение экспрессии антиапоптотических белков, восстановление иммунной видимости через лиганды, устранение иммуносупрессивного лактатного барьера. В литературе это также описывается как:
- Метаболическая сенсибилизация — переключение с гликолиза на OXPHOS, снижение лактата
- Иммунная сенсибилизация — экспрессия стресс-лигандов, ICAM-1, DR5
- Химиосенсибилизация — снижение ABCG2 и других efflux-насосов
Резюме
Логика обсуждаемого подхода в значительной степени подтверждается данными. Главные точки, на которые стоит обратить внимание:
- Статус p53 — критический предиктор эффективности. Без wtp53 индукция лигандов может не произойти
- Микроокружение опухоли — лактат, гипоксия, TAM, Treg — мощные иммуносупрессоры, и DCA адресует только часть из них (лактат). Нужны дополнительные методы для преодоления остальных барьеров
- Периферическая нейропатия — главное клиническое ограничение DCA при длительном применении, хотя при малых дозах менее выражено
- Доказательная база — большая часть данных получена in vitro и на животных моделях. Клинических испытаний мало, и они небольшие
Концепция «малых доз для иммунной активации вместо высоких доз для апоптоза» выглядит как перспективное направление, но требует подтверждения в клинических условиях — особенно с учётом p53-зависимости и необходимости комбинации с методами преодоления других механизмов иммуноэвазии опухоли (ускользания опухоли от иммунного надзора).
Что такое иммуноэвазия опухоли
Иммуноэвазия — это совокупность механизмов, с помощью которых опухолевые клетки избегают распознавания и уничтожения иммунной системой. Это не один процесс, а целая программа адаптации опухоли в рамках концепции иммунного редактирования (elimination → equilibrium → escape).
Ключевые механизмы иммуноэвазии
- Снижение презентации антигенов. Опухоль уменьшает экспрессию молекул главного комплекса гистосовместимости (MHC I), из‑за чего цитотоксические T‑клетки не видят опухолевые клетки. Часто это связано с потерей β2‑микроглобулина или дефектами в путях процессинга антигенов.
- Экспрессия лигандов, индуцирующих гибель лимфоцитов. Например, лиганд FasL (CD95L) на поверхности опухолевых клеток запускает апоптоз активированных T‑клеток, которые приходят атаковать опухоль.
- Создание иммуносупрессивного микроокружения. Опухоль и ассоциированные с ней клетки (миелоидные супрессорные клетки, Treg, M2‑макрофаги) выделяют факторы (TGF‑β, IL‑10, аденозин), подавляющие активность эффекторных иммунных клеток.
- Экспрессия контрольных точек. PD‑L1 на опухолевых клетках связывается с PD‑1 на T‑клетках и «выключает» их. Аналогично работает CTLA‑4.
- Физическое экранирование и плохая инфильтрация. Плотный внеклеточный матрикс, аномальная сосудистая сеть и высокое интерстициальное давление мешают проникновению иммунных клеток внутрь опухоли.
- Метаболическая иммуносупрессия. Опухоль «вытягивает» ключевые метаболиты: потребляет глюкозу (оставляя Т‑клетки без энергии), выделяет лактат (подавляет функции лимфоцитов), расходует триптофан (через IDO) — всё это снижает активность иммунитета.
- Маскировка «сигналов опасности». Снижение экспрессии стресс‑индуцированных лигандов (MICA/B, ULBP), которые распознают NK‑клетки, либо их шеддинг (отщепление растворимых форм), нейтрализующих рецепторы NK.
- Мимикрия и толерантность. Экспрессия «не трогай меня» сигналов (CD47 связывается с SIRPα на макрофагах и подавляет фагоцитоз).
Связь с концепциями «денудации» и «ложной дормантности»
С учётом ваших интересов к «снятию защиты» опухоли:
- «Денудация» (обнажение) в терминах иммунологии — это восстановление видимости опухоли для иммунитета: вернуть MHC I, стресс‑лиганды для NK, убрать CD47, снизить иммуносупрессию.
- Ложная дормантность (если трактовать как состояние сниженной метаболической активности без классических признаков стрессовой дормантности) может быть связана с уменьшением «сигналов тревоги» и антигенной нагрузки, что помогает опухоли ускользать от иммунного контроля.
- Напротив, гиперстресс, гипоксия, воспаление и усиленный гликолиз (которые автор упоминал как путь к обычной дормантности) сами по себе могут одновременно усиливать иммуноэвазию: гипоксия индуцирует PD‑L1 и VEGF, лактат подавляет Т‑клетки и NK, провоспалительные цитокины могут рекрутировать Treg и M2‑макрофаги.
Таким образом, попытка «обнажить» опухоль может требовать не только прямого воздействия на раковые клетки, но и коррекции микроокружения — снижения иммуносупрессии, нормализации метаболизма и восстановления антигенной презентации.
Как эти механизмы учитывают в терапии
- Ингибиторы контрольных точек (анти‑PD‑1/PD‑L1, анти‑CTLA‑4) снимают «тормоза» с Т‑клеток.
- Агонисты ко‑стимулирующих рецепторов (например, анти‑OX40, анти‑4‑1BB) усиливают активацию Т‑клеток.
- Модуляция метаболизма (ингибиторы IDO, снижение лактата, коррекция доступности глюкозы/аминокислот) может улучшать функцию иммунных клеток в опухоли.
- Усиление стресс‑лигандов и снижение CD47 исследуются для активации NK и макрофагов.
- Комбинированные стратегии (лучевая терапия, некоторые химиопрепараты, отдельные таргетные агенты) могут действовать как «иммуногенная смерть клетки» — вызывать высвобождение DAMP, усиливать презентацию антигенов и привлекать иммунные клетки.
Связь с веществами, с которыми мы сочетаем
- Куркумин, лютеолин, беталаины в доклинических моделях показывают способность модулировать сигнальные пути (NF‑κB, STAT3), снижать продукцию иммуносупрессивных цитокинов и влиять на поляризацию макрофагов; однако это не означает, что они «снимают защиту» опухоли в клинической практике.
- DCA может менять метаболизм опухоли (снижая гликолиз и влияя на митохондрии), что теоретически может влиять на лактат и иммуносупрессию, но эффекты сильно зависят от контекста и микроокружения.
- Бетулин/бетулиновая кислота в исследованиях показывают проапоптотические и противовоспалительные эффекты, но их прямое влияние на иммуноэвазию у человека не установлено.
О взаимодействии ДХА и Янтарной кислоты
DCA сам по себе увеличивает концентрацию всех интермедиатов цикла Кребса. Протеомные исследования на клетках рака лёгкого показали, что DCA повышает уровень каждого промежуточного продукта TCA-цикла, не влияя на поглощение глюкозы или гликолитический процесс от глюкозы до пирувата. Это происходит потому, что DCA, ингибируя киназу пируватдегидрогеназы (PDK), активирует пируватдегидрогеназу (PDH), направляя пируват в митохондрии и запуская цикл Кребса на полную мощность. pmc.ncbi.nlm.nih.gov +1
Теоретический потенциал сукцината: при активном цикле Кребса сукцинат окисляется сукцинатдегидрогеназой (комплекс II ETC), генерируя FADH₂ — электронный донор для дыхательной цепи. Больше электронов → больше ROS → больше повреждение митохондрий → деполяризация мембраны → выход цитохрома c → апоптоз. В этом смысле добавление сукцината теоретически могло бы усилить поток через комплекс II.
Но есть важное «но»: накопление сукцината может работать и против вас. При мутациях гена SDH (сукцинатдегидрогеназы), которые встречаются при некоторых типах рака, сукцинат накапливается и ингибирует α-кетоглутарат-зависимые диоксигеназы, что стабилизирует HIF-1α и способствует опухолевому росту. Так что экзогенный сукцинат в контексте опухолей с дисфункцией SDH может оказаться скорее вредным.
Малат и фумарат могут быть интереснее — они способствуют усилению цикла и продукции NADH, не имея такого выраженного противоопухолевого «двойного дна», как сукцинат. Но и по ним данных в комбинации с DCA практически нет.
Резюме по интермедиатам: теоретическое обоснование есть, но экспериментальных подтверждений именно для комбинации с DCA недостаточно. Это направление требует изучения, и возможны как позитивные, так и негативные эффекты в зависимости от типа опухоли.
Что действительно доказано как усилитель действия DCA
Вот что имеет экспериментальные и/или клинические подтверждения:
Метаболические агенты с аналогичным механизмом
Тиамин (витамин B₁) в высоких дозах и бенфотиамин — работают аналогично DCA: тиаминпирофосфат (TPP) снижает фосфорилирование PDH, уменьшает мембранный потенциал митохондрий и запускает каспазный апоптоз. Высокие дозы тиамина сопоставимы по эффекту с DCA в подавлении пролиферации раковых клеток. pmc.ncbi.nlm.nih.gov +1
Связь между витамином B1 (тиамином) и дихлорацетатом (DCA) в контексте онкологии — это пересечение двух путей к одной и той же мишени.
Общая мишень: пируватдегидрогеназа (PDH)
Зачем нужен витамин B1: три причины
1. B1 — кофактор PDH. Активная форма тиамина — тиаминпирофосфат (TPP) — необходима самому ферменту PDH для работы. Первый этап работы PDH-комплекса — декарбоксилирование пирувата с образованием гидроксиэтилтиамина. Без достаточного количества TPP фермент физически не может функционировать, даже если DCA снял фосфорилирование. Проще говоря: DCA «открывает замок», а B1 — это ключ, который нужен, чтобы механизм действительно заработал. pmc.ncbi.nlm.nih.gov +1
2. Высокие дозы B1 действуют аналогично DCA. Показано, что тиаминпирофосфат сам по себе блокирует фосфорилирование PDH киназой PDK — точно так же, как DCA. На клеточных линиях нейробластомы и рака поджелудочной высокие дозы тиамина снижали фосфорилирование PDH, уменьшали потребление глюкозы и продукцию лактата, снижали митохондриальный мембранный потенциал и активировали каспазу-3 (апоптоз). IC50 тиамина оказался даже ниже, чем у DCA. pmc.ncbi.nlm.nih.gov +1
3. DCA вызывает дефицит B1. Метаболизм самого DCA идёт через глиоксилат, который превращается в глицин, CO₂ и оксалат. Этот путь расходует тиамин, и при длительном приёме DCA развивается периферическая нейропатия — именно из-за истощения запасов B1. Поэтому в клинической практике при лечении DCA рекомендуется добавлять комплекс витаминов группы B, включая тиамин, для профилактики нейропатии. dovepress.com +1
Почему возможен синергизм
Комбинация DCA + B1 бьёт по одной мишени (PDK/PDH) с двух сторон:
- DCA ингибирует PDK, не давая ей фосфорилировать PDH
- TPP (B1) одновременно блокирует фосфорилирование PDH и служит обязательным кофактором для работы самого фермента
- Вместе они полнее переключают метаболизм раковой клетки с гликолиза на окислительное фосфорилирование
Кроме того, B1 защищает нервную систему от побочного действия DCA, делая терапию более безопасной.
Важные оговорки
- Тиамин имеет двойственный эффект: в низких и умеренных дозах он, наоборот, стимулирует рост раковых клеток (служит кофактором в пентозофосфатном пути для синтеза нуклеотидов). Противоопухолевой активностью обладают именно высокие дозы. pmc.ncbi.nlm.nih.gov +1
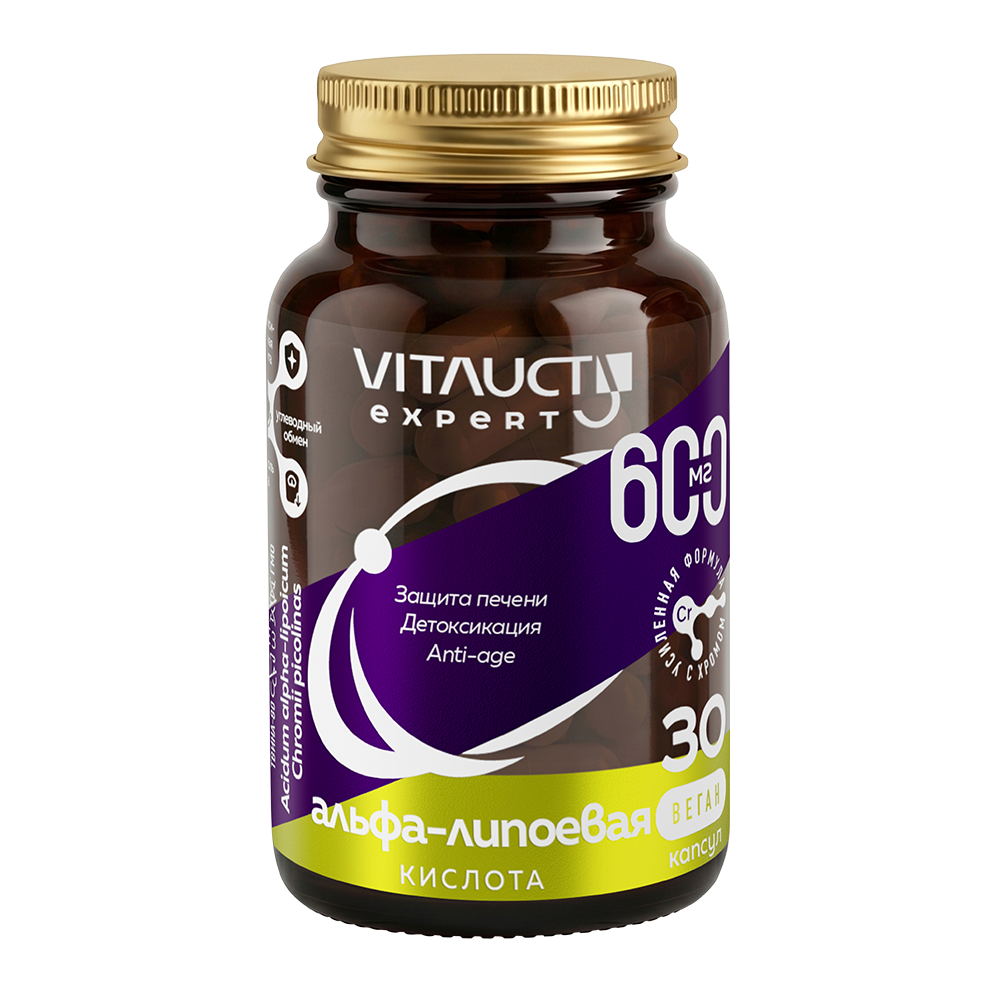 льфа-липоевая кислота (ALA) — кофактор PDH и ингибитор PDK, то есть работает по тому же пути, что и DCA. ALA оказалась даже более эффективной, чем DCA, в подавлении пролиферации, снижении лактата и индукции апоптоза. В клиническом протоколе ALA использовалась вместе с DCA также для нейропротекции — снижения периферической нейропатии, вызываемой DCA. pmc.ncbi.nlm.nih.gov +1
Альфа-Липоевая кислота (от Витаукт) можно у нас заказать – облегчают переносимость и усиливает действие дихлорацетата (DCA) при онкологии.
Общий механизм: атака на «эффект Варбурга»
Раковые клетки предпочитают получать энергию через аэробный гликолиз — даже при достатке кислорода они превращают пируват в молочную кислоту, а не окисляют его в митохондриях (это и есть эффект Варбурга). DCA и АЛК бьют по этой метаболической аномалии, но с разных сторон, и их комбинация работает synergично.
АЛК: кофактор PDH + ингибитор PDK + прооксидант
Альфа-липоевая кислота действует сразу на трёх уровнях, которые дополняют эффект DCA:
- АЛК — кофактор PDH. Она входит в состав пируватдегидрогеназного комплекса как липоамид, ковалентно связанный с ферментом. Когда DCA разблокирует PDH (снимая фосфорилирование), для полноценной работы фермента требуется достаточное количество липоевой кислоты. Повышенная активность PDH, вызванная DCA, увеличивает потребность в АЛК — без неё активированный фермент работает не на полную мощность. pmc.ncbi.nlm.nih.gov +1
- АЛК сама ингибирует PDK. Независимо от DCA, альфа-липоевая кислота подавляет киназу пируватдегидрогеназы, пусть и слабее, чем DCA. Двойное ингибирование одного и того же фермента двумя разными молекулами усиливает переключение метаболизма с гликолиза на окислительное фосфорилирование. pmc.ncbi.nlm.nih.gov +1
- Прооксидантный эффект в митохондриях. Хотя АЛК известна как антиоксидант, в контексте раковых клеток она проявляет и прооксидантные свойства: увеличивает митохондриальное дыхание, что ведёт к генерации активных форм кислорода (АФК). DCA делает то же самое — сдвиг к окислительному метаболизму повышает продукцию АФК. Вместе они создают в митохондриях раковых клеток окислительный стресс, который запускает апоптоз. Этот механизм показан на клетках рака толстой кишки и лёгких. patents.google.com +1
Почему именно вместе эффективнее
| Параметр | DCA | АЛК | Комбинация |
|---|---|---|---|
| Ингибирование PDK | Сильное | Умеренное | Усиленное |
| Активация PDH | Через снятие фосфорилирования | Как кофактор фермента | Полная функциональная активация |
| Сдвиг к окислительному метаболизму | Да | Да | Синергичный |
| Продукция АФК в митохондриях | Увеличивает | Увеличивает | Кумулятивный окислительный стресс |
| Индукция апоптоза | Каспазный путь | Каспазный путь (caspase-3) | Усиленный апоптоз |
Простыми словами: DCA «открывает дверь» в митохондрии для пирувата, а АЛК обеспечивает эту дверь работающим «замком» (кофактор), сама по себе немного «подталкивает» пируват в ту же сторону и одновременно генерирует разрушительный для раковой клетки окислительный стресс. pmc.ncbi.nlm.nih.gov +1
Дополнительная роль: защита нервов
В клинической практике (в альтернативных онкологических клиниках, где DCA применяется off-label) АЛК вместе с ацетил-L-карнитином и бенфотиамином назначают прежде всего для профилактики и лечения периферической нейропатии — главного побочного эффекта DCA. По наблюдениям более чем у 300 пациентов с запущенным раком, включение нейропротекторов снизило риск нейропатии примерно до 20% при дозировке DCA 20–25 мг/кг/день. said-lab.com +1
- АЛК — мощный антиоксидант, и при сочетании с некоторыми видами химиотерапии её может потребоваться отменять (она способна снижать цитотоксический эффект препаратов, действующих через окисление).
- В одном из источников отмечается, что АЛК может активировать фактор транскрипции NRF2, который связан с генами метастазирования (HIF-1α, VEGF-A) — это потенциальный риск, требующий учёта.
- Эффективность DCA сильно зависит от метаболического фенотипа опухоли: чем более она гликолитическая, тем выше шанс ответа.
- Оксалоацетат — естественный интермедиат, который ингибирует использование глутамина в раковых клетках, блокируя альтернативный путь получения энергии. Используется в клинических протоколах вместе с DCA.
Лекарственные препараты с доказанным синергизмом
- Метформин — одна из лучших изученных комбинаций. DCA и метформин синергически индуцируют апоптоз в клетках рака яичников, молочной железы, глиобластомы. Метформин блокирует комплекс I ETC, а DCA направляет пируват в митохондрии — вместе это создаёт «идеальный шторм» ROS. Метформин также снимает защитную аутофагию и снижает Mcl-1 (антиапоптотический белок), который DCA парадоксально повышает. dcaguide.org +1
Ингибиторы метилирования ДНК (5-азацитидин)
DCA проникает в клетки через транспортер SLC5A8 (SMCT1), который у многих опухолей эпигенетически silenced (заглушен) через метилирование промотора. Ингибиторы метилирования ДНК восстанавливают экспрессию SLC5A8, делая опухолевые клетки чувствительными к DCA даже в низких концентрациях (от 1 мМ вместо обычных 10–50 мМ). Это, пожалуй, самый эффективный способ потенцирования — он решает главную проблему DCA: низкую биодоступность для опухолевых клеток. pmc.ncbi.nlm.nih.gov +1
Бутират короткоцепочечных жирных кислот
SLC5A8 транспортирует не только DCA, но и бутират, который ингибирует гистондеацетилазы (HDAC) и сам по себе индуцирует апоптоз раковых клеток. Комбинация DCA + бутират потенциально даёт двойной удар: DCA через метаболический сдвиг, бутират через эпигенетическую регуляцию.
Природные соединения
- Куркумин — синергия с DCA в гепатоме (Huh-7): драматическое усиление апоптоза через митохондриальный путь, активация каспаз 7 и 9, повышение ROS. Гибриды куркумина и DCA показали антипролиферативную и антиметастатическую активность в клетках рака молочной железы. ar.iiarjournals.org +1
- Берберин — природный алкалоид с противораковыми свойствами, ингибирует PI3K/Akt/mTOR. В комбинации с куркумином показывает синергию, и логически может дополнять DCA через дополнительные пути индукции апоптоза.
Дополнительные подходы
- Озонотерапия (в/в) и витамин C (в/в, высокие дозы) — коррелируют с лучшим ответом в клинических протоколах.
- Бикарбонат — модуляция pH. DCA снижает лактат и повышает внутриклеточный pH, а также может снижать экспрессию монокарбоксилатных транспортеров и V-АТФазы, закисляя опухолевые клетки. Бикарбонат натрия изучался как дополнительный агент.
- NAD (никотинамидадениндинуклеотид) — используется в клинических протоколах для потенцирования DCA.
Сводка наиболее перспективных комбинаций
| Комбинация | Механизм | Уровень доказательности |
|---|---|---|
| DCA + метформин | Двойной удар по митохондриям, ROS | In vitro + in vivo |
| DCA + ингибиторы метилирования ДНК | Восстановление SLC5A8, снижение дозы DCA | In vitro |
| DCA + ALA (альфа-липоевая) | Усиление PDH, нейропротекция | In vitro + клинический протокол |
| DCA + тиамин (высокие дозы) | Активация PDH через TPP | In vitro |
| DCA + PX-478 | Двойное ингибирование PDK | In vitro |
| DCA + куркумин | Митохондриальный апоптоз, ROS | In vitro |
| DCA + сулиндак | ROS, JNK, митохондриальная дисфункция | In vitro |
| DCA + оксалоацетат | Блок глутаминолиза | Клинический протокол |
Термины
— Денудация = denudatio — обнажение-раздевание сути опухоли, полное снятие с неё одежды-защиты и ослабление агреесивности, де-резиленция + сенсибилизация = денудация. — Термин ввёл Г. А. Гарбузов.
— Резиленция (resilience) — дословно упругость, эластичность, противодействие. Означает способность адаптироваться к изменяющимся условиям и сохранять или восстанавливать функциональность после нарушения. Термин резиленция следует размежёвывать с резистенция, которые по сути схожи, но различны по принципу и механизму. Резистенция = резистентность в общепринятом смысле подходит для обычных гомеостазов маятникового типа с одной осью регулировок, тогда как резиленция для — двухгомеостазных тандемных механизмов регулировок с противоположной направленностью само коррекций, что делает такую систему более надёжной и гибкой. Ригидность – имеет противоположный смысл термину резиленция. Под ригидностью чаще понимают жесткость мембран онкоклеток не дающая им возможность к адекватному реагированию. Резистентность — это чаще про прямое сопротивление: мутации, которые делают мишень препарата недоступной, или активация насосов, выкачивающих лекарство. Это часто линейная реакция на конкретный фактор. Особенность онкологии в том, что в её условиях такое взаимодействие стромы и сомы ведёт не просто к резистентности, а к другому формату: трансформации и появлению с одной стороны новых фенотипов в соме, а с другой — новых модификатов в строме, а в итоге такая система переходит на принципы автономии, без управления извне. По сути, это Система Открытого Типа, которая может существовать безлимитно. Конечно, такие системы в условиях неограниченного питания приобретают максимально возможную устойчивость. Создаётся новый регуляторный контур, тандем (паразитная автономия), где каждая из сторон, страдая сама, спасает противоположную сторону. Особенность в том, что осуществляется это с помощью клеточных переходов (превращений — например, проходить эпителиально-мезенхимальный переход, EMT) из одного типа в другой тип. Причем одна из сторон состоит их неонкологических клеток, но модифицированных, а другая — из эпигенетически онкологических. Подавляя эту систему, мы будем затрагивать одну из её здоровых сторон, а значит и одновременно будем подавлять и аналогичные здоровые клетки в организме. В условиях организма такая онкосистема неприступна, неуязвима, так как подавляя по отдельности любую одну из сторон опухоли, мы неизменно получаем усиление активности и противодействие с противоположной её стороны. В итоге такая дуалистичная Уклоняющаяся Регуляторная Система (УРС) как хамелеон меняет свою маску-облик и легко ускользает от всех подавляющих её факторов или регуляторных сигналингов, заводя систему в парадоксальный ответ. Таким образом, УРС усугубляет проблему, делает её непреодолимой, нерегулируемой прямыми внешними способами. Маскировку или мимикрию ей обеспечивает наличие не «мутировавших», но модифированных иммунных клеток. Только если нам удастся парализовать эту мимикрию и фенотипическую пластичность (путём увеличения «зазора», клиренса чувствительности, меняя контексты) нам удастся воздействовать на эту систему. Ключом для расширения клиренса сенсибилизации может быть только полуголод всего организма (на принципах полуавтономии, т.е. без стресса) с «отмычками» для онкоклеток (де-резиленция) в виде углеводов как D-Манноза, которыми опухоль насытится в первую очередь, но не сможет их метаболизировать. Кроме де-резиленции важны также подходы по де-резистенции в пределах каждой стороны тандема и де-ригидности мембран онкоклеток (с помощью омега-3).
Термин «резиленция» предложен, чтобы описать именно эту сложную, тандемную адаптацию опухоли, и на её основе автор выстраивает новые принципы к лечению — например, идею «де-резиленции» (снижения пластичности опухоли) в сочетании с сенсибилизацией (повышением чувствительности к терапии), чтобы не просто давить, а лишать систему возможностей для перестройки-приспособлений = парадоксальности ответов. После подготовки опухоли и утраты ею агрессивности и достижения дормантности проводят «штурм» с целью повышения таргетного оксидативного стресса.
Конечно, такая конструкция метода введения опухоли в окончательный без компромиссный феноптоз пока во многом гипотетическая и дискуссионная — многие детали механизмов ещё изучаются. Но она даёт ценный эвристический инструмент: заставляет смотреть на опухоль не как на монолит, а как на динамичную, самоорганизующуюся систему, и искать точки воздействия именно на её адаптивные механизмы, например, расширяя «адаптивный эффект», а не только на отдельные мишени. — Биологический смысл термина резиленция в контексте онкологии предложен Г. А. Гарбузов.
Книги автора
 ЭПИФИЗ — ВЕРХОВНЫЙ ДРАЙВЕР ОНТОГЕНЕЗА. КЛЮЧ К МОЛОДОСТИ И СТАРЕНИЮ
 ВЗЛОМ ИММУННЫХ МЕХАНИЗМОВ СТАРЕНИЯ — ПУТЬ К ЮНОСТИ И ЗДОРОВЬЮ
 ЗДОРОВЬЕ, МОЛОДОСТЬ, ДОЛГОЛЕТИЕ. КАК МАГНИЙ И ОКСИД АЗОТА ПРОТИВОСТОЯТ СТАРЕНИЮ
Глубокий анализ существующих причин старения позволил автору создать свою единую теорию «биологии старения», которая строится на интеграции процессов сенесцента (на уровне клеток) и сенилита (на системном уровне). Показана решающая роль магния и оксида азота в регулировке на клеточном уровне сенесцента. Именно сенесцент (нарушение гомеостазов) определяет механизм сенилита (нарушение гормезиса и витаукта), а с ними и возрастзависимых «болезней», которые на самом деле не болезни, а естественные анизомалии, то есть механизмы реализации старения. Только правильное понимание сути природы старения позволит выйти на правильные пути преодоления возрастных болезней и продления жизни человека через механизмы неотении (продлённой молодости), чему посвящена следующая книга автора «Биология молодости».
 САМОУНИЧТОЖЕНИЕ РАКОВЫХ ОПУХОЛЕЙ. ФЕНОМЕН АПОПТОЗА
Онкология. Можно ли её вылечить безвредными способами? Автор впервые показывает, что можно и нужно! Для этого нужно запустить механизмы избирательного самоуничтожения раковых клеток в организме на основе клеточных программ апоптоза и аутофагии, которые нужно адресно открыть. Предложена Комплексная Программа из противоположно направленных методов, вычлененных в две фазы и направленных на расшатывание и перебалансировку основных жизнеобеспечивающих механизмов клеток, в т. ч. антиоксидантной « прооксидантной, провоспалительной « антивоспалительной и др. У онкоклеток коридор возможностей самозащиты, их гормезис намного уже, чем у нормальных клеток, у которых Жизненная Сила, Витаукт, намного выше. Такая разность возможностей позволяет создавать особые условия, когда становится возможным запуск механизмов самовыбраковки онкоклеток.
 ОМОЛОЖЕНИЕ ЧЕРЕЗ НЕОТЕНИЮ – 2026 г.
Книгу или Программу-консультацию по заболеваниям Вы можете приобрести по нашему адресу.
Вы можете обратиться с вопросами или за консультацией к Гарбузову Геннадию Алексеевичу на сайте garbuzov.org, по адресу: vitauct@yandex.ru или по телефону 8 (928) 239-13-64.
Похожие статьи
Биолог, дипломированный фитотерапевт, нутрициолог, кандидат биологических наук
Стаж 40 лет
Подробнее обо мне